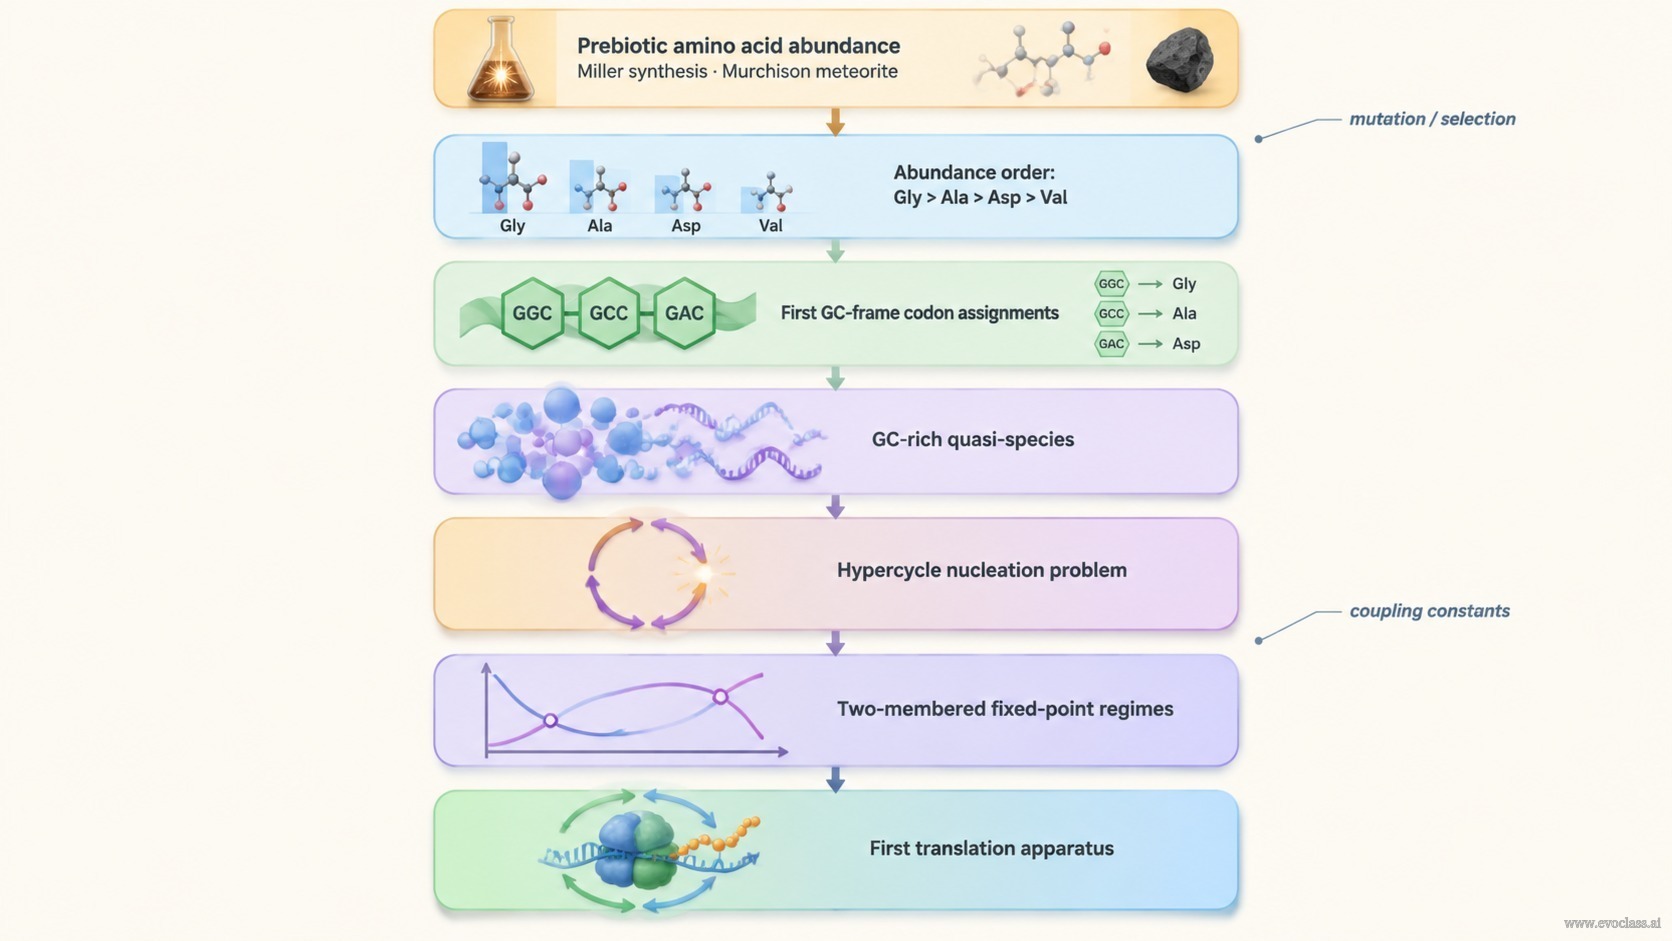
ต้นกำเนิดของการแปลรหัสพันธุกรรมมักถูกจินตนาการว่าเกิดจากการประกอบตัวของไรโบโซมขึ้นมาอย่างทันทีทันใด สไลด์นี้เลือกแนวทางที่แตกต่างออกไป โดยเริ่มต้นจาก ความอุดมสมบูรณ์ของกรดอะมิโนในยุคพรีไบโอติก และตั้งคำถามว่าเครื่องมือแปลรหัสพันธุกรรมชิ้นแรกต้องเป็นส่วนหนึ่งขององค์กรระดับสูงใด
จากเคมีพรีไบโอติกสู่อักษรตัวแรก
การสังเคราะห์พรีไบโอติกจำลอง (การทดลองแบบ Miller) และองค์ประกอบสารอินทรีย์ของอุกกาบาตเมอร์ชิสันชี้ไปที่กลุ่มจำกัดของ กรดอะมิโนอะลิฟาติก แทนที่จะเป็นส่วนผสมที่เท่ากัน ปริมาณผลผลิตและความอุดมสมบูรณ์ในอุกกาบาตกลับเอียงอย่างชัดเจน โดยไกลซีนมีมากที่สุด ตามด้วยอะลานีน กรดแอสปาร์ติก และวาลีน ความเอียงนี้คือวัตถุดิบตั้งต้นที่อักษรพันธุกรรมชุดแรกสามารถนำมาสร้างได้
ลำดับความอุดมสมบูรณ์และโคดอนในกรอบ GC ชุดแรก
ลำดับ Gly > Ala > Asp > Val ถูกใช้เพื่อกำหนดลำดับการกำหนดโคดอนในกรอบ GC ชุดแรก โคดอนที่ประกอบขึ้นจาก G และ C จะจับคู่กับกรดอะมิโนที่เรียบง่ายและอุดมสมบูรณ์ที่สุดก่อน ทำให้ความอุดมสมบูรณ์ทางเคมีและรูปแบบการเข้ารหัสในยุคแรกสอดคล้องกัน ภายใต้การตีความนี้ ระบบการเข้ารหัสแรกสุดเป็นระบบที่อุดมด้วย GC และการกำหนดของมันเป็นผลจากความพร้อมใช้งานมากกว่าความบังเอิญ
ปัญหาการก่อตัวเริ่มต้นของไฮเปอร์ไซเคิล
ไฮเปอร์ไซเคิลมีพฤติกรรมแตกต่างจากตัวจำลองที่เร่งปฏิกิริยาตัวเองเพียงตัวเดียว โดยหลักการแล้วตัวจำลองหนึ่งตัวสามารถเริ่มจากสำเนาแม่แบบเพียงชุดเดียวได้ แต่เครือข่ายแบบวงจรทำไม่ได้ เพราะการปิดวงจรต้องให้สมาชิกทุกตัวอยู่พร้อมกันในเวลาเดียวกัน เครื่องมือแปลรหัสพันธุกรรมชิ้นแรกจึงไม่ใช่สิ่งประดิษฐ์ระดับโมเลกุลที่แยกโดด แต่ต้องประกอบขึ้นทีละขั้นจากควอซีสปีชีส์ที่อุดมด้วย GC โดยการกลายพันธุ์และการคัดเลือกค่อย ๆ เพิ่มและปรับปรุงองค์ประกอบของมันไปทีละขั้นจนกระทั่งวงจรปิด
จุดคงที่ของไฮเปอร์ไซเคิลแบบสองสมาชิก
การวิเคราะห์จุดคงที่ของไฮเปอร์ไซเคิลแบบสองสมาชิกแสดงให้เห็นว่าผลลัพธ์ขึ้นอยู่กับ ค่าคงที่การเชื่อมโยงสัมพัทธ์ ที่เชื่อมโยงสมาชิกเข้าด้วยกัน ปรากฏสภาวะเชิงคุณภาพสามแบบ ได้แก่ การแข่งขันโดยตรง ซึ่งสมาชิกตัวหนึ่งเอาชนะอีกตัวหนึ่ง การคัดเลือกสมาชิกใดสมาชิกหนึ่ง ขึ้นอยู่กับเงื่อนไขเริ่มต้น และการเสริมเสถียรภาพไฮเปอร์ไซเคิลซึ่งกันและกัน ซึ่งสมาชิกแต่ละตัวเสริมความแข็งแกร่งให้แก่กัน มีเพียงสภาวะสุดท้ายเท่านั้นที่รองรับเครื่องมือที่เชื่อมโยงกับการแปลรหัสพันธุกรรม เพราะเป็นกรณีที่การจำลอง RNA และการสังเคราะห์เปปไทด์เสริมกำลังกันแทนที่จะแข่งขันกัน
การแปลรหัสพันธุกรรมในฐานะจุดเปลี่ยน ไม่ใช่สิ่งประดิษฐ์
ภาพที่ปรากฏคือเครื่องมือแปลรหัสพันธุกรรมชิ้นแรกเป็น จุดเปลี่ยนในระบบไฮเปอร์ไซเคิล ที่เชื่อมโยงการจำลอง RNA การสังเคราะห์เปปไทด์ และการปิดวงจรตัวเร่งปฏิกิริยา คำถามนำทางคือ XI. จะเริ่มการแปลรหัสพันธุกรรมได้อย่างไร? แผนผังข้างต้นตอบคำถามนี้ โดยจุดเริ่มต้นคือความอุดมสมบูรณ์ทางเคมี และจุดสิ้นสุดคือวงจรที่เสริมกำลังตัวเอง ซึ่งเข้าถึงได้ผ่านการกลายพันธุ์ การคัดเลือก และการเชื่อมโยงที่เพียงพอ
กรดอะมิโนในยุคพรีไบโอติกและเครื่องมือแปลรหัสพันธุกรรมชิ้นแรกแผนผังแบบเป็นขั้นตอนเชื่อมโยงความอุดมสมบูรณ์ของกรดอะมิโนในยุคแรกเริ่ม (ข้อมูลจากการสังเคราะห์แบบ Miller และอุกกาบาตเมอร์ชิสัน) เข้ากับเครื่องมือแปลรหัสพันธุกรรมชิ้นแรก โดยผ่านลำดับความอุดมสมบูรณ์ Gly > Ala > Asp > Val การกำหนดโคดอนในกรอบ GC ชุดแรกสุด ควอซีสปีชีส์ที่อุดมด้วย GC ปัญหาการก่อตัวเริ่มต้นของไฮเปอร์ไซเคิล และสภาวะจุดคงที่ของวงจรแบบสองสมาชิก สิ้นสุดที่เครื่องมือแปลรหัสพันธุกรรมที่ยึดเหนี่ยวกันไว้ด้วยการจำลอง RNA การสังเคราะห์เปปไทด์ และการปิดวงจรตัวเร่งปฏิกิริยา